Article publié le vendredi 13 novembre 2026 dans la catégorie Santé.
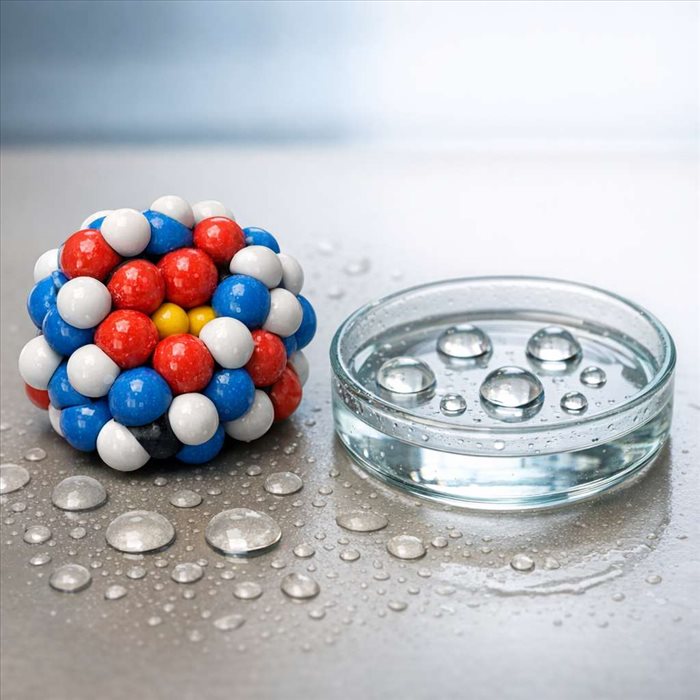
Le repliement protéique correspond au passage d’une chaîne d’acides aminés à une forme tridimensionnelle stable et active. Dans une cellule, cette transformation se déroule principalement dans l’eau. Or, certaines portions de la chaîne interagissent mal avec ce milieu.
L’effet hydrophobe constitue donc une force directrice majeure : il favorise l’enfouissement des groupes apolaires et contribue à former une protéine compacte. Il n’agit toutefois jamais seul : la structure finale dépend aussi de nombreuses interactions chimiques et du contexte cellulaire.
Le défi du repliement : une protéine doit cacher ses zones hydrophobes
Acides aminés hydrophiles et hydrophobes : des affinités différentes pour l’eau
Une protéine est une chaîne d’acides aminés reliés par des liaisons peptidiques. Sa structure primaire, c’est-à-dire sa séquence, contient des chaînes latérales aux propriétés variées. Les résidus hydrophobes, tels que la leucine, l’isoleucine, la valine, la phénylalanine ou le tryptophane, possèdent des groupes majoritairement apolaires. Ils établissent peu d’interactions favorables avec l’eau.
À l’inverse, les résidus hydrophiles sont polaires ou chargés. Ils peuvent former des liaisons hydrogène ou des interactions électrostatiques avec l’eau. Dans une protéine globulaire soluble, cette différence se traduit souvent par une organisation simple :
les groupes apolaires sont préférentiellement enfouis, tandis que les groupes hydrophiles restent exposés au solvant.
| Type de résidu | Interaction dominante avec l’eau | Position fréquente dans une protéine globulaire |
| Hydrophobe, apolaire | Peu favorable | Cœur interne |
| Hydrophile, polaire ou chargé | Favorable | Surface exposée |
De la chaîne linéaire à une structure tridimensionnelle fonctionnelle
La séquence ne reste pas étendue au hasard. Elle adopte des structures secondaires locales, notamment des hélices alpha et des feuillets bêta, puis une structure tertiaire : l’architecture globale d’une chaîne. Cette conformation native doit être suffisamment stable, mais aussi assez souple pour assurer une fonction, par exemple reconnaître une molécule ou catalyser une réaction.
Le sujet est détaillé dans cet article sur le
repliement protéique en biochimie. Le point essentiel est que la chaîne ne cherche pas une forme esthétique : elle évolue vers des conformations dont l’énergie libre est plus faible dans son environnement.
L’effet hydrophobe : pourquoi l’eau favorise le regroupement des résidus apolaires
L’organisation de l’eau autour des surfaces non polaires
L’eau liquide forme un réseau dynamique de liaisons hydrogène. Lorsqu’une surface apolaire y est exposée, les molécules d’eau voisines ne peuvent pas établir avec elle les interactions habituelles qu’elles formeraient avec un groupe polaire ou chargé. Elles s’organisent alors de manière plus contrainte afin de préserver, autant que possible, leurs interactions entre elles.
Il faut éviter une idée reçue : les résidus hydrophobes ne « s’attirent » pas nécessairement par une force directe comparable à une liaison chimique.
Le phénomène est surtout gouverné par la réponse de l’eau. Réduire la surface apolaire accessible au solvant diminue la perturbation imposée au réseau aqueux.
Le gain d’entropie lorsque les groupes hydrophobes se rapprochent
Si deux surfaces apolaires dispersées se rapprochent, une partie de l’eau qui les entourait est libérée dans le volume du solvant. Elle retrouve davantage de configurations possibles. Cette augmentation d’entropie contribue à rendre l’état compact plus favorable.
La stabilité s’exprime par l’énergie libre de Gibbs : ?G = ?H - T?S. Une conformation est favorisée lorsque sa variation d’énergie libre devient négative. Dans le cas hydrophobe, le gain entropique associé à la libération d’eau est souvent déterminant. L’ampleur exacte de l’effet dépend toutefois de la température, de la taille des surfaces apolaires et de la composition du milieu.
- Surface apolaire exposée élevée : davantage d’eau contrainte autour de la chaîne.
- Regroupement des résidus apolaires : diminution de la surface accessible au solvant.
- Libération d’eau : gain d’entropie et stabilisation relative de l’état compact.
Comment l’effet hydrophobe organise le cœur des protéines globulaires
Un cœur compact apolaire et une surface majoritairement hydrophile
Dans beaucoup de protéines globulaires, les résidus hydrophobes constituent un cœur interne dense. Les contacts entre chaînes latérales y sont nombreux et précis. La surface extérieure, elle, présente plus souvent des groupes capables d’interagir avec l’eau. Cette distribution ne suit pas une règle absolue : certains résidus apolaires peuvent participer à un site de liaison de surface, et des résidus polaires peuvent être enfouis s’ils remplissent un rôle structural ou catalytique.
La compaction réduit la surface accessible au solvant, sans transformer la protéine en objet rigide. La structure tertiaire résulte d’un compromis entre l’enfouissement apolaire, la géométrie de la chaîne et les interactions nécessaires à la fonction. Pour approfondir cette architecture, consultez la
définition et le rôle de la structure tertiaire.
L’effondrement hydrophobe, première étape vers la structure native
Au début du processus, une chaîne peut subir un
effondrement hydrophobe : les segments apolaires se rapprochent rapidement, donnant un intermédiaire compact. Cette étape limite l’espace des conformations possibles, ce qui aide la protéine à trouver sa structure native sans explorer toutes les formes imaginables.
Cet effondrement n’est pourtant pas la destination finale. Un cœur mal empaqueté peut conserver des cavités, exposer des zones hydrophobes ou emprisonner des contacts incorrects. Le paysage énergétique du repliement comprend ainsi plusieurs intermédiaires et barrières : la protéine doit atteindre non seulement un état compact, mais le bon arrangement atomique.
L’effet hydrophobe ne suffit pas à déterminer le repliement final
Liaisons hydrogène, interactions ioniques et forces de Van der Waals
L’effet hydrophobe fournit une poussée générale vers la compaction. La précision de la forme dépend d’autres forces. Les liaisons hydrogène du squelette peptidique stabilisent les hélices alpha et les feuillets bêta ; elles sont examinées dans cet article sur les
liaisons hydrogène qui stabilisent les protéines.
Les interactions ioniques entre groupes chargés peuvent renforcer ou déstabiliser une conformation selon le pH et la force ionique. Les forces de Van der Waals, faibles individuellement, deviennent importantes lorsque les atomes du cœur sont correctement ajustés. Enfin, des ponts disulfure entre cystéines peuvent verrouiller certaines structures, surtout dans les protéines extracellulaires ; leur rôle est présenté dans
la stabilisation par les ponts disulfure.
Le rôle de la séquence, du milieu cellulaire et des chaperonnes moléculaires
La séquence primaire contient l’information nécessaire à l’architecture générale, mais le milieu compte. Température, pH, sels, concentration en protéines et vitesse de synthèse modifient les équilibres. Dans la cellule encombrée, des chaperonnes moléculaires reconnaissent souvent des régions hydrophobes momentanément exposées. Elles empêchent des associations inappropriées et donnent à la chaîne le temps de se réorganiser, sans dicter arbitrairement sa forme. Leur fonction est détaillée dans cet article sur les
chaperonnes moléculaires et le repliement.
Quand le repliement échoue : agrégation, mauvais repliement et maladies
Une protéine dénaturée ou incomplètement repliée peut exposer des segments hydrophobes normalement cachés. Ces segments tendent alors à se coller à ceux d’autres molécules : c’est l’agrégation protéique.
Le même principe qui favorise un cœur interne correct peut donc favoriser des amas non fonctionnels lorsque les partenaires rencontrés sont les mauvaises chaînes.
La chaleur, des variations extrêmes de pH, certains solvants ou agents chaotropes peuvent provoquer une dénaturation et accroître ce risque. Des défauts de repliement et d’agrégation sont impliqués dans plusieurs maladies, mais le lien précis varie selon la protéine, le tissu et les mécanismes de contrôle cellulaire. Le maintien de la forme native dépend ainsi d’un équilibre permanent entre compaction hydrophobe, interactions spécifiques et surveillance cellulaire.
Le rôle déterminant de l’eau dans la forme des protéines
Dans un milieu aqueux, les chaînes latérales apolaires tendent à se regrouper afin de limiter leur contact avec l’eau. Cette dynamique favorise la formation d’un cœur compact et rend certaines conformations plus stables sur le plan thermodynamique.
L’eau ne repousse pas activement les zones hydrophobes : son organisation et le gain d’entropie associé à leur enfouissement orientent le processus.
Cette force reste toutefois générale, non suffisante pour construire seule une structure fonctionnelle. Liaisons hydrogène, interactions électrostatiques, ajustement des atomes et contexte cellulaire assurent la précision finale.
Une protéine correctement conformée résulte donc d’un équilibre entre compaction, interactions spécifiques et mécanismes de contrôle qui limitent l’agrégation.
Questions courantes
L’effet hydrophobe est-il une véritable liaison entre les acides aminés ?
Non : il ne s’agit pas d’une liaison chimique directe, comme une liaison covalente ou ionique. Le regroupement des groupes apolaires est surtout favorisé par l’eau, qui retrouve davantage de liberté lorsque leur surface exposée diminue.
C’est un effet collectif du milieu aqueux, auquel s’ajoutent ensuite des contacts de Van der Waals précis.
Pourquoi les protéines membranaires possèdent-elles des zones hydrophobes exposées ?
Parce que leur environnement n’est pas l’eau, mais la bicouche lipidique. Leurs segments hydrophobes sont orientés vers les queues apolaires des lipides, tandis que les régions en contact avec les milieux aqueux restent généralement hydrophiles. Le principe reste identique : les propriétés de surface s’adaptent au solvant local.
Une protéine peut-elle se replier correctement sans chaperonne moléculaire ?
Oui, certaines petites protéines peuvent atteindre spontanément leur conformation native dans des conditions favorables. Les chaperonnes deviennent particulièrement utiles lorsque le repliement est lent, complexe ou exposé au risque d’agrégation dans la cellule. Elles
réduisent les interactions inappropriées sans fournir elles-mêmes le plan structural de la protéine.
La température modifie-t-elle l’effet hydrophobe ?
Oui. L’effet hydrophobe dépend des propriétés thermodynamiques de l’eau, elles-mêmes sensibles à la température. Une variation thermique peut donc modifier l’équilibre entre état replié et état déplié. Si la température devient trop élevée, les interactions qui maintiennent l’organisation fine de la protéine peuvent être perturbées, ce qui favorise la dénaturation.
Les résidus hydrophobes sont-ils toujours complètement cachés dans une protéine ?
Non. Certains restent accessibles lorsqu’ils participent à la reconnaissance d’un ligand, à l’assemblage avec une autre protéine ou à une interface membranaire. Leur exposition est alors compensée par une fonction spécifique ou par des contacts avec un partenaire. Un résidu apolaire de surface n’est donc pas forcément le signe d’un mauvais repliement.
Le mauvais repliement conduit-il systématiquement à une maladie ?
Non. Les cellules disposent de systèmes de contrôle qui tentent de replier, réparer ou dégrader les protéines défectueuses. Une maladie peut apparaître lorsque ces mécanismes sont dépassés, ou lorsqu’une protéine mal conformée forme des agrégats persistants.
Le contexte cellulaire est déterminant dans les conséquences d’un mauvais repliement.