Article publié le jeudi 24 septembre 2026 dans la catégorie Santé.
Les protéines ne sont pas des objets rigides : leur activité dépend d’une forme tridimensionnelle maintenue par de nombreuses interactions faibles. Parmi elles, les liaisons hydrogène jouent un rôle central. Elles ne suffisent généralement pas, seules, à stabiliser une protéine, mais leur répétition et leur organisation en réseaux rendent certaines conformations nettement plus favorables que d’autres. Elles soutiennent le repliement, la reconnaissance moléculaire et le fonctionnement des enzymes, tout en restant sensibles au milieu, à la température et aux mutations.
Définition et propriétés des liaisons hydrogène dans les protéines
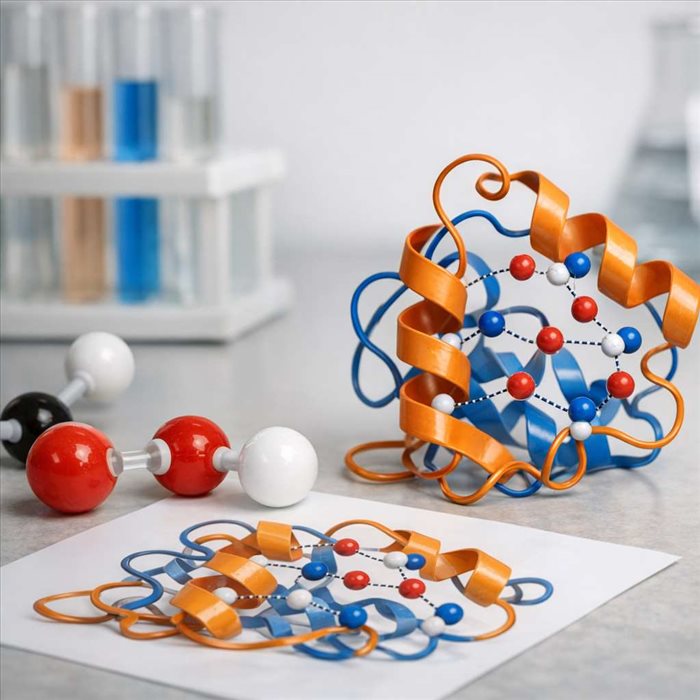
Une liaison hydrogène apparaît lorsqu’un atome d’hydrogène, lié de manière covalente à un atome électronégatif comme l’oxygène ou l’azote, interagit avec un autre atome porteur d’électrons disponibles. Dans une protéine, elle est souvent représentée par le motif O–H···O ou N–H···O.
La géométrie compte autant que la présence des atomes. Une liaison est plus stabilisante lorsque donneur, hydrogène et accepteur sont correctement orientés et suffisamment proches. Elle n’est donc pas une simple attraction automatique entre deux groupes polaires : le repliement doit placer ces groupes dans une configuration compatible.
Donneurs, accepteurs et géométrie d’une liaison hydrogène
Un groupe N–H ou O–H peut fournir l’hydrogène : c’est le donneur. Un oxygène ou un azote possédant un doublet électronique libre peut le recevoir : c’est l’accepteur. La force effective d’une liaison varie selon l’environnement local, l’orientation des partenaires et la concurrence de l’eau.
Dans une protéine repliée, les liaisons hydrogène sont particulièrement utiles lorsqu’elles sont
coordonnées en réseau. Une interaction isolée apporte un gain limité ; une série de liaisons complémentaires peut, elle, verrouiller une hélice, une boucle ou une interface entre deux domaines.
Les groupes du squelette peptidique et des chaînes latérales impliqués
Le squelette peptidique fournit à chaque liaison amide un groupe carbonyle C=O, souvent accepteur, et un groupe N–H, souvent donneur. Ces motifs répétés expliquent pourquoi les liaisons hydrogène structurent si efficacement les formes régulières des protéines.
Les chaînes latérales polaires participent aussi au réseau : sérine, thréonine, tyrosine, asparagine, glutamine, histidine ou lysine, entre autres, peuvent intervenir selon leur état chimique. Cette contribution complète les différences entre
structure primaire et structure secondaire : la séquence impose les groupes disponibles, tandis que leur arrangement spatial rend certaines liaisons possibles.
Stabilisation des structures secondaire et tertiaire
Les liaisons hydrogène ne créent pas la séquence d’une protéine, mais elles aident cette séquence à adopter et à conserver une architecture ordonnée. Leur rôle est visible dès les structures secondaires, puis dans l’assemblage global de la molécule.
Maintien des hélices a et des feuillets ß par les liaisons du squelette
Dans une hélice a, le carbonyle d’un résidu établit typiquement une liaison hydrogène avec le N–H d’un résidu situé quelques positions plus loin. La répétition de ce motif le long de la chaîne maintient la forme hélicoïdale. Dans les feuillets ß, les liaisons se forment entre brins voisins ; ils peuvent être parallèles ou antiparallèles.
| Organisation | Disposition des liaisons hydrogène | Effet structural principal |
| Hélice a | Entre groupes du même segment peptidique | Stabilise une spirale compacte |
| Feuillet ß | Entre brins peptidiques voisins | Maintient une surface plissée |
| Boucle ou coude | Entre groupes rapprochés par le repliement | Fixe une orientation locale |
Ces liaisons limitent les mouvements excessifs du squelette sans le figer totalement.
La stabilité utile est un équilibre entre tenue mécanique et flexibilité.
Organisation des boucles, des coudes et des contacts entre régions éloignées
Les portions moins régulières, telles que les boucles, peuvent être stabilisées par des liaisons entre chaînes latérales ou entre une chaîne latérale et le squelette. Des résidus éloignés dans la séquence peuvent ainsi se rapprocher après le repliement et maintenir un contact précis.
Cette étape contribue à la
structure tertiaire d’une protéine, c’est-à-dire à la disposition complète de ses hélices, feuillets et régions flexibles. Les réseaux de liaisons hydrogène aident notamment à orienter les domaines les uns par rapport aux autres.
Rôle du milieu aqueux dans la stabilité protéique
L’eau est indispensable à la plupart des protéines biologiques, mais elle modifie fortement l’intérêt énergétique des liaisons hydrogène internes. Un groupe polaire exposé peut déjà former des liaisons avec les molécules d’eau ; créer une liaison interne ne représente donc pas automatiquement un avantage majeur.
Compétition entre les liaisons hydrogène avec l’eau et les interactions internes
À la surface, les groupes polaires sont souvent stabilisés par leur hydratation. Lorsqu’ils sont enfouis, ils perdent ces interactions avec l’eau. Il devient alors important qu’ils établissent des contacts internes satisfaisants. Un donneur ou accepteur isolé au cœur de la protéine peut être énergétiquement défavorable.
Les points essentiels sont les suivants :
- À la surface, l’eau peut remplacer ou concurrencer une liaison hydrogène interne.
- Au cœur de la protéine, les groupes polaires doivent généralement trouver des partenaires internes.
- Un réseau mal orienté ou incomplet peut fragiliser le repliement plutôt que le renforcer.
- Les changements de pH peuvent modifier la charge et la capacité de certains groupes à établir ces contacts.
Enfouissement des groupes polaires et complémentarité au cœur de la protéine
Le repliement regroupe souvent les résidus hydrophobes à l’intérieur, mais le cœur protéique contient aussi des groupes polaires. Ceux-ci sont fréquemment organisés en paires ou réseaux de liaisons hydrogène. Cette complémentarité évite de laisser des fonctions chimiques insatisfaites dans un milieu peu accessible à l’eau.
Le
repliement protéique dépend donc à la fois de l’effet hydrophobe et d’un ajustement fin des interactions polaires. Les liaisons hydrogène participent davantage à la précision de la structure qu’à son unique force motrice.
Contribution à la fonction et à la reconnaissance moléculaire
Une protéine fonctionnelle doit conserver une forme générale stable tout en présentant des zones capables de se lier à des partenaires. Les liaisons hydrogène assurent cette double exigence grâce à leur directionnalité.
Spécificité de la fixation aux ligands, substrats et partenaires protéiques
Dans un site de liaison, donneurs et accepteurs sont placés de manière à reconnaître des groupes chimiques précis d’un ligand, d’un substrat ou d’une autre protéine.
La complémentarité spatiale donne une part importante de la spécificité. Une liaison hydrogène peut distinguer deux molécules proches si une seule présente le bon groupe au bon endroit.
Ces contacts restent réversibles, ce qui est indispensable aux échanges biologiques. Une interaction trop forte empêcherait la libération du partenaire après la réaction ou le signal.
Ajustement des réseaux de liaisons hydrogène dans les sites actifs enzymatiques
Dans les enzymes, des liaisons hydrogène peuvent orienter le substrat, stabiliser un état de transition ou régler la réactivité d’un résidu catalytique. Elles peuvent également inclure une ou plusieurs molécules d’eau, intégrées au mécanisme réactionnel.
Le réseau n’est pas toujours immobile : une légère réorganisation lors de la fixation peut favoriser l’activité. La protéine utilise ainsi des interactions nombreuses mais relativement faibles pour combiner stabilité et adaptation.
Limites des liaisons hydrogène et facteurs qui déstabilisent les protéines
Réduire la stabilité protéique aux seules liaisons hydrogène serait trompeur. Leur effet dépend du contexte et se combine à d’autres interactions. Une modification qui casse une liaison peut être compensée, ou au contraire provoquer un défaut majeur si elle perturbe tout un réseau.
Coopération avec les interactions hydrophobes, ioniques et de van der Waals
L’effet hydrophobe favorise le regroupement des parties apolaires ; les interactions de van der Waals optimisent l’emboîtement des atomes ; les interactions ioniques rapprochent des charges opposées. Les
ponts disulfure, lorsqu’ils existent, apportent quant à eux une liaison covalente plus robuste.
Les liaisons hydrogène agissent surtout en coopération. Elles affinent la forme obtenue par l’ensemble de ces forces plutôt qu’elles ne déterminent seules la stabilité.
Effets des mutations, du pH et de la température sur les réseaux de liaisons hydrogène
Une mutation peut supprimer un donneur, un accepteur ou modifier l’encombrement autour d’une liaison essentielle. Le pH change l’état de protonation de plusieurs chaînes latérales et peut réorganiser les contacts. La chaleur augmente l’agitation moléculaire, ce qui fragilise progressivement les interactions non covalentes.
C’est l’une des raisons pour lesquelles
les protéines se dénaturent à la chaleur : les réseaux de liaisons hydrogène, comme les autres interactions faibles, ne compensent plus suffisamment les mouvements qui déstabilisent leur forme active.
Des réseaux d’interactions au service de la forme protéique
Les liaisons hydrogène stabilisent les protéines en organisant leur squelette, leurs chaînes latérales et leurs zones de reconnaissance. Leur efficacité ne tient pas seulement à leur nombre, mais à leur
orientation précise, à leur insertion dans des réseaux cohérents et à leur environnement, notamment aqueux. Elles soutiennent les hélices et les feuillets, contribuent à la structure tertiaire et participent à la fixation sélective de substrats ou de partenaires. Leur action reste toutefois indissociable des interactions hydrophobes, ioniques, de van der Waals et parfois des ponts disulfure. Une protéine stable résulte donc d’un
équilibre dynamique : les liaisons hydrogène maintiennent une architecture fonctionnelle tout en laissant la souplesse nécessaire à son activité.